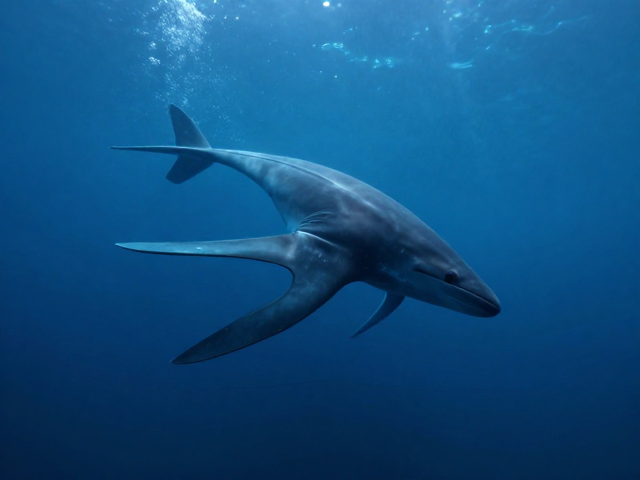
流线型躯干与桨状前肢的形态演化
深海环境的极端压力与低能见度,迫使生物在漫长的演化中抛弃了复杂的骨骼结构,转而采用更适应流体动力学的形态。所谓“前肢呈桨状”的特征,通常指向诸如棱皮龟或某些深海大型头足类动物,其前肢骨骼特化为宽大的扁平结构,表面覆盖致密的结缔组织与肌肉,形成类似船桨或机翼的几何形状。这种结构并非用于快速划水,而是通过改变迎角和流体压力分布,在缺乏高爆发动力的情况下,实现高效的升力生成与长距离滑行。这种形态极大地降低了能量消耗,使得生物能够在食物资源稀疏的深海中层带或深渊带中,以极低的代谢率维持生命活动。
此类形态特征与深海物理环境有着严密的对应关系。在数百米以下的深度,水的密度和粘度对运动产生的阻力显著增加,传统的摆动式游泳方式效率极低。桨状前肢通过大面积的表面积切割水流,配合尾部或躯干的微弱摆动,能够产生持续的推进力。这种运动模式被称为“升力推进”,它允许生物在静止或微动状态下悬停观察,或缓慢巡游搜索猎物。这种生理结构的稳定性,是深海生态系统中顶级掠食者或大型滤食者能够长期生存的关键物理基础,也是生物力学在极端环境下适应性演化的典型案例。
红外感应与深海视觉替代机制
关于“红外感应”在深海生物中的描述,需要结合深海的光学特性进行科学辨析。在阳光无法穿透的深海区域,可见光几乎完全缺失,传统的基于光子反射的视觉系统功能大幅衰减。然而,部分深海生物如某些鲨鱼、鳐鱼或甲壳类动物,确实拥有高度特化的感官系统。虽然生物体直接像蛇类那样通过颊窝感知环境热辐射(红外)的能力在深海低温且无温差显著目标的环境中效率有限,但许多深海生物演化出了替代方案,如侧线系统感知水流细微变化,或利用生物发光进行主动照明与通信。某些情况下,“红外感应”可能是对高灵敏度光感受器的误读,这些感受器能捕捉极其微弱的光子,甚至能感知生物体自身产生的微弱生物发光或周围物体反射的极少量环境光。
若深入探讨热感应机制,部分深海硬骨鱼或软骨鱼确实具备能感知温度梯度的神经末梢,但这更多用于定位不同水温层下的猎物行踪,而非像地表捕食者那样直接探测温血动物的红外辐射。在深海生态中,热源并不像陆地那样作为主要的定位信号,因为水体会迅速传导热量,导致温差信号微弱且扩散迅速。因此,所谓的“红外感应”更可能表现为对微弱光线的极致捕捉能力,或是对化学信号(嗅觉/味觉)和电信号(电感受器)的综合处理。这种多模态感官融合,使得深海生物能在绝对黑暗中构建起精确的环境模型,弥补视觉信息的缺失。
深海怪物的生存策略与生态位
深海生物的外形特征直接服务于其生存策略,桨状前肢与特化感官系统的结合,确立了它们在深海食物网中的独特生态位。对于大型掠食者而言,缓慢而高效的巡游能力使其能够覆盖广阔的海域,寻找散布的鲸落、大型鱼类或无脊椎动物。它们不依赖爆发力追逐猎物,而是依靠隐蔽接近和突然袭击。对于滤食性生物,如棱皮龟,桨状前肢使其能在水中长时间保持姿态,过滤浮游生物和小型软体动物。这种低能耗的生活方式,是对深海资源匮乏环境的直接适应,避免了因能量收支不平衡导致的种群崩溃。
在生态系统中,这些生物扮演着关键的调节者角色。它们通过捕食控制下层种群数量,同时其尸体(如鲸落)会滋养整片深海区域的微生物和无脊椎动物群落。外形上的特化,如流线型身体减少阻力,特化感官提高探测效率,都是为了在极端环境中最大化生存概率。这种生存秘密并非依赖单一的超级器官,而是整体生理结构与环境压力的精细匹配。每一个外形细节,从鳍的边缘形状到感官器官的排列,都是数百万年自然选择筛选出的最优解,确保了物种在黑暗深渊中的延续与繁衍。